Epigenetik I:
Konsep dan Metilasi DNA
 Beranda
Bramadi Arya, S.Si., M.Biotech
Biologi Molekuler II · Pertemuan 2
Program Studi S1 Ilmu Biomedis
Universitas Syedza Saintika
Sasaran pertemuan
Pertemuan 2 · Konsep epigenetik dan mekanisme metilasi DNA
Sub-CPMK 2: menjelaskan konsep epigenetik dan mekanisme metilasi DNA.
Alur pertemuan
- Definisi epigenetik dan syarat “diwariskan”
- Kimia metilasi: bagaimana DNMT memindahkan gugus metil
- Tiga fungsi enzim: de novo, pemeliharaan, dan penghapusan (TET)
- Bagaimana metilasi membungkam gen: pembaca dan penghalang
- Fungsi fisiologis: imprinting dan inaktivasi X
- Metilasi pada kanker, terapi, gizi, biopsi cair, dan cara mengukurnya
Definisi yang presisi
Epigenetik: perubahan fungsi gen yang diwariskan secara mitotik (kadang meiotik) tanpa perubahan urutan basa.
- Heritabel: pola bertahan setelah sel membelah
- Tidak mengubah urutan DNA: berbeda dari mutasi
- Reversibel: dapat ditulis dan dihapus enzim
Faktor transkripsi yang hilang saat sinyal berhenti bukan epigenetik. Pola metilasi yang disalin ke sel anak adalah epigenetik.
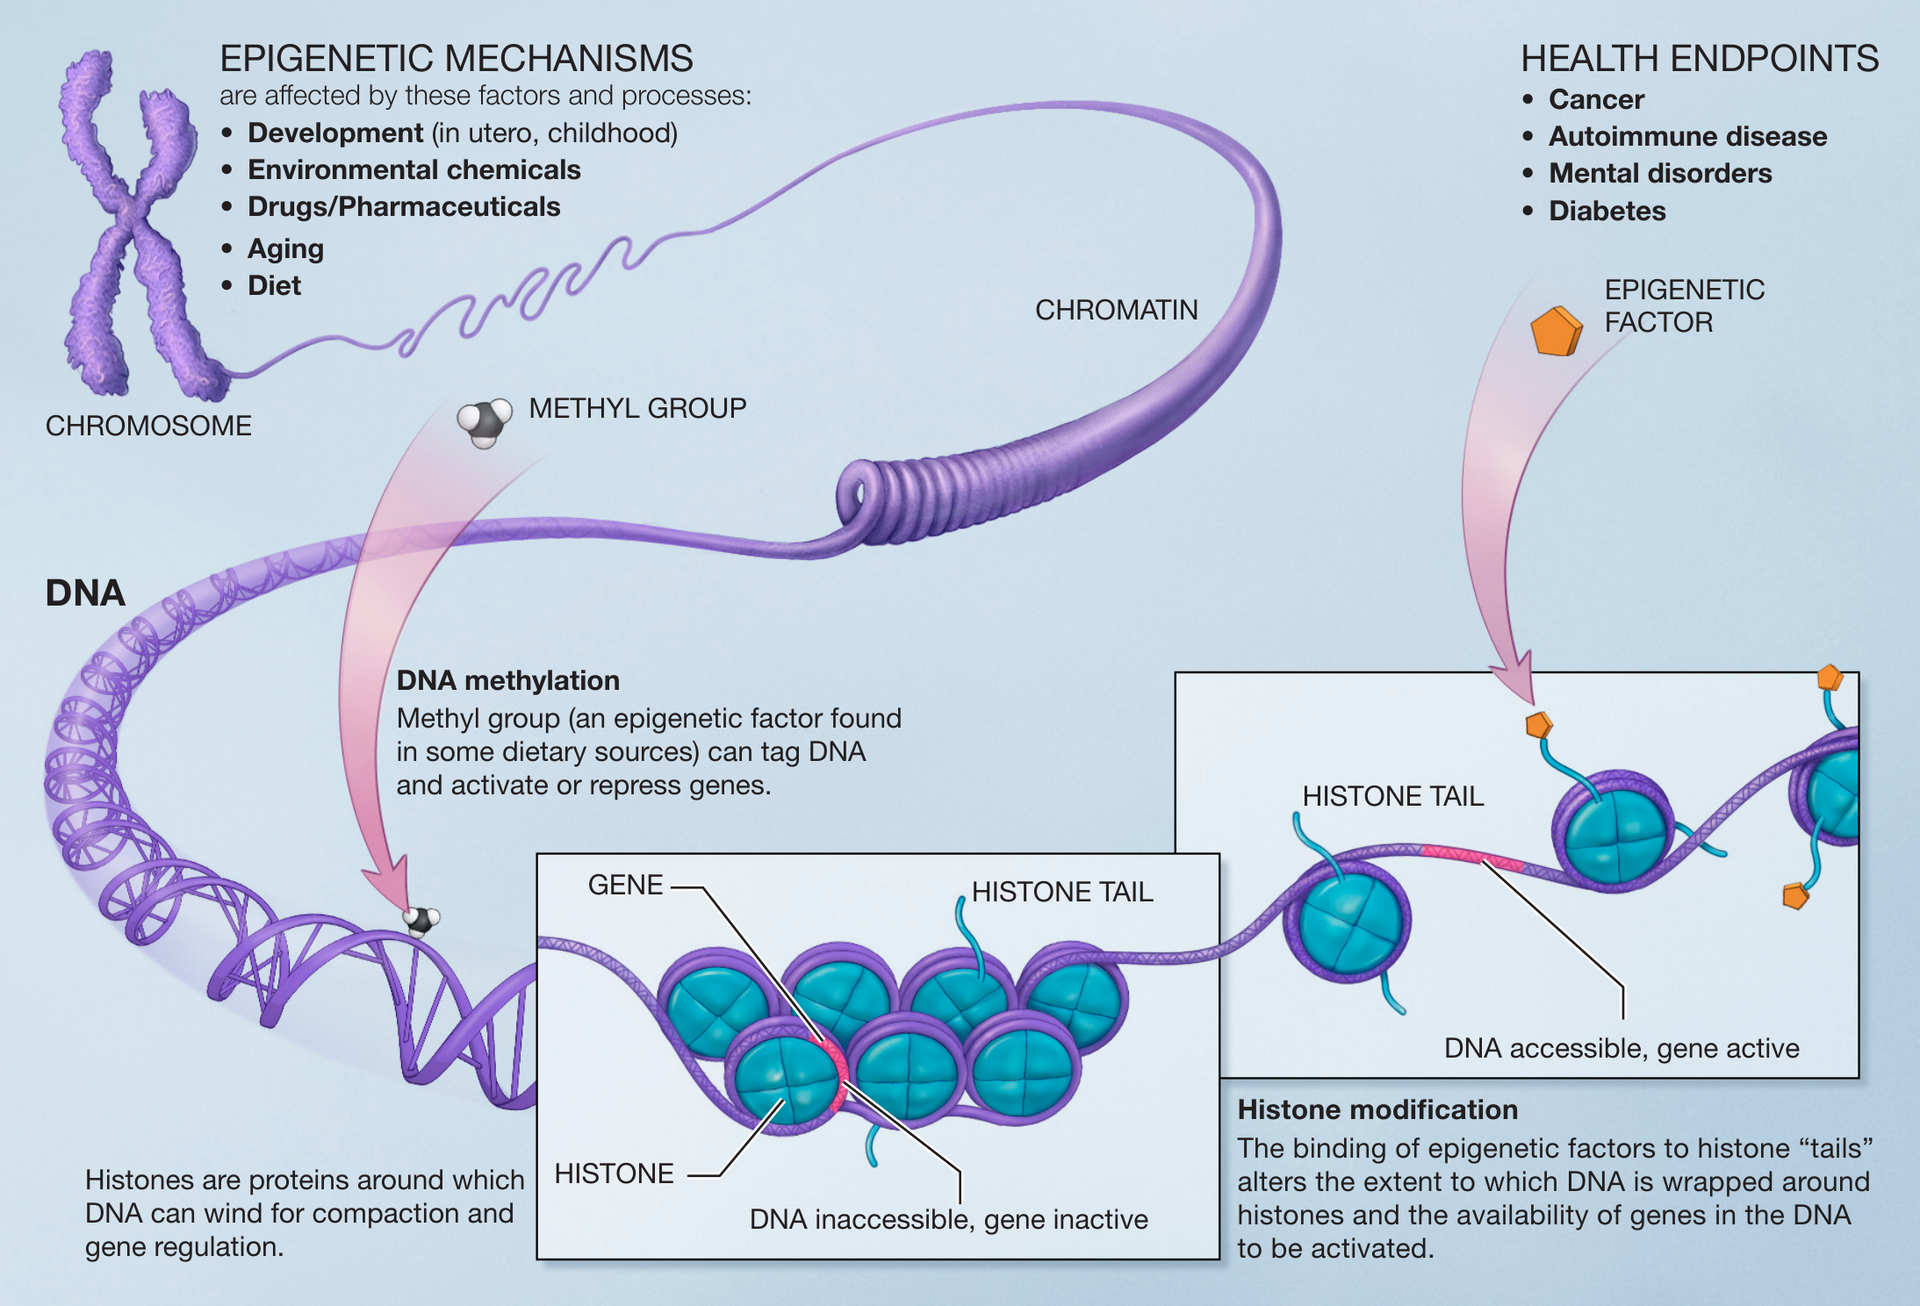
![Dua mekanisme epigenetik utama: metilasi DNA dan modifikasi histon]()
Metilasi DNA dan modifikasi histon sebagai dua lapisan utama. Sumber: NIH Common Fund, via Wikimedia Commons.
Di mana metilasi terjadi
- Target utama: sitosin pada dinukleotida CpG
- CpG palindromik, sehingga metilasi simetris di kedua untai
- Sekitar 70 sampai 80 persen CpG genom manusia termetilasi
- Namun CpG langka, sekitar seperempat dari frekuensi harapan
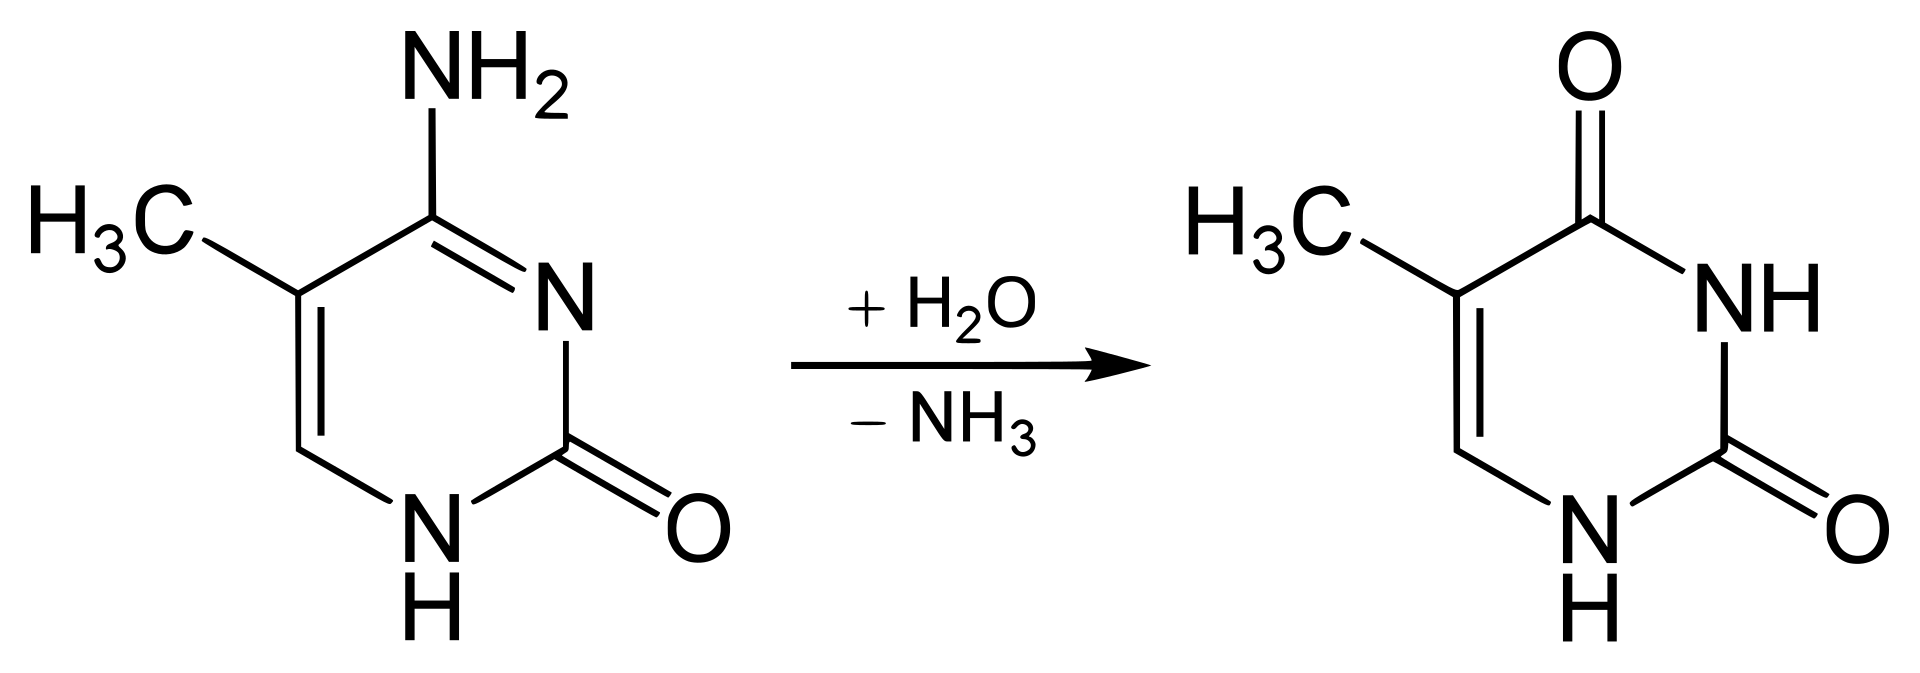
Mengapa langka? Deaminasi spontan 5mC menghasilkan timin. Salah pasang T:G lebih sulit dikenali daripada U:G, sehingga CpG “terkikis” selama evolusi dan menjadi titik panas mutasi C ke T.
![Deaminasi 5-metilsitosin menjadi timin]()
Deaminasi 5-metilsitosin menjadi timin. Sumber: Wikimedia Commons.
CpG island
Wilayah yang lolos dari pengikisan karena umumnya tidak termetilasi di sel germinal.
Kriteria klasik (Gardiner-Garden dan Frommer, 1987):
- Panjang lebih dari 200 pb, kandungan GC lebih dari 50 persen
- Rasio CpG teramati terhadap harapan lebih dari 0,6
Sekitar 60 sampai 70 persen promotor gen manusia mengandung CpG island, termasuk hampir semua gen housekeeping.
CpG island di promotor biasanya tidak termetilasi (gen aktif), sedangkan CpG di luar island umumnya termetilasi.
Kimia reaksi metilasi
- Donor metil: S-adenosilmetionin (SAM), berubah menjadi S-adenosilhomosistein (SAH)
- Base flipping: DNMT memutar sitosin keluar dari heliks ke kantong katalitik
- Serangan nukleofilik: sisteina di situs aktif menyerang C6, membentuk ikatan kovalen sementara
- Transfer metil ke karbon C5
- Eliminasi: enzim lepas, menyisakan 5-metilsitosin (5mC)
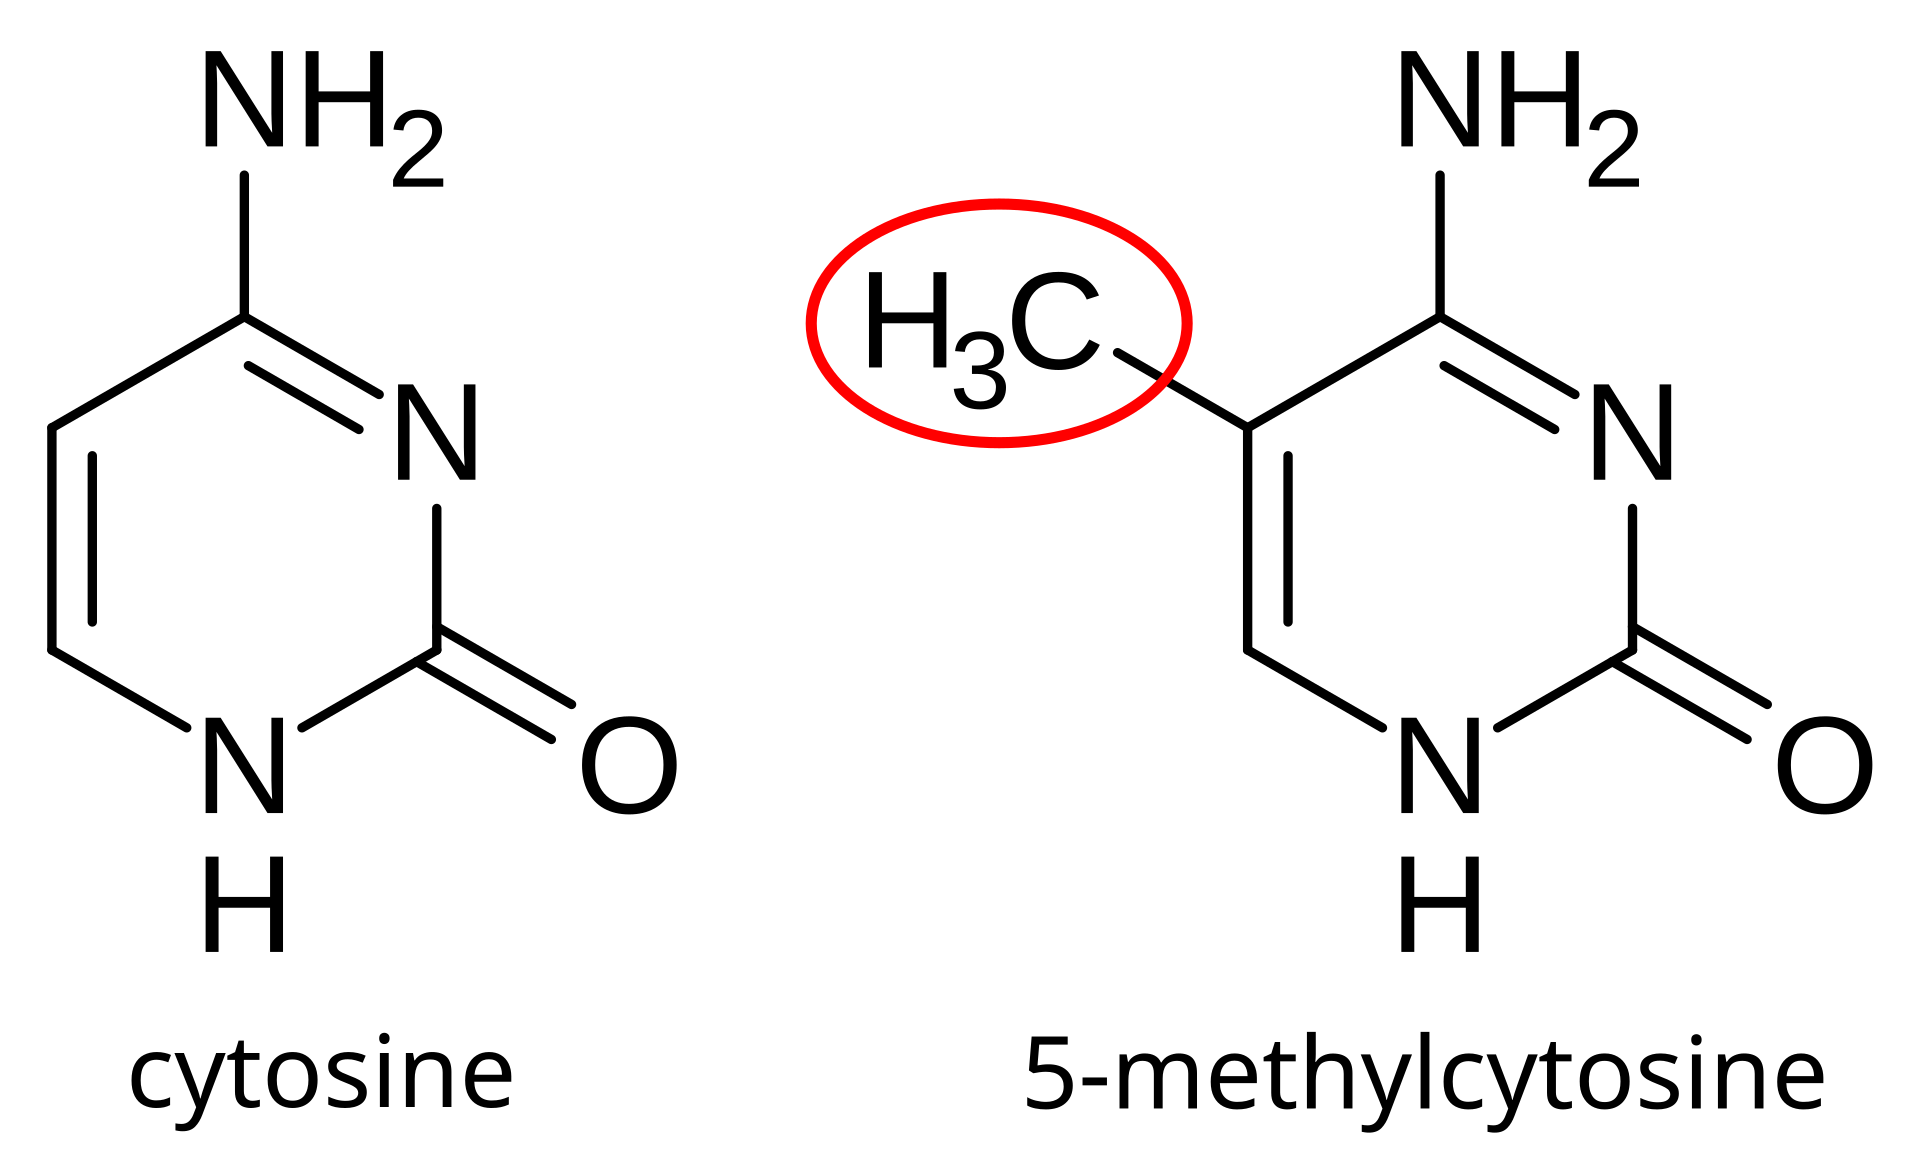
Gugus metil pada C5 menjulur ke alur mayor DNA, tempat protein “membaca” urutan. Metilasi mengubah protein mana yang dapat mengikat tanpa mengubah pasangan basa.
![Struktur sitosin dan 5-metilsitosin]()
Sitosin dan 5-metilsitosin: gugus metil pada C5. Sumber: Wikimedia Commons.
Keluarga DNMT
| DNMT3A |
Metilasi de novo |
Menulis pola baru saat perkembangan dan diferensiasi |
| DNMT3B |
Metilasi de novo |
Penting untuk wilayah repetitif dan perisentromer |
| DNMT3L |
Kofaktor, tanpa aktivitas katalitik |
Menstimulasi DNMT3A/3B, penting di sel germinal |
| DNMT1 |
Metilasi pemeliharaan |
Memilih CpG hemimetilasi, menyalin pola saat replikasi |
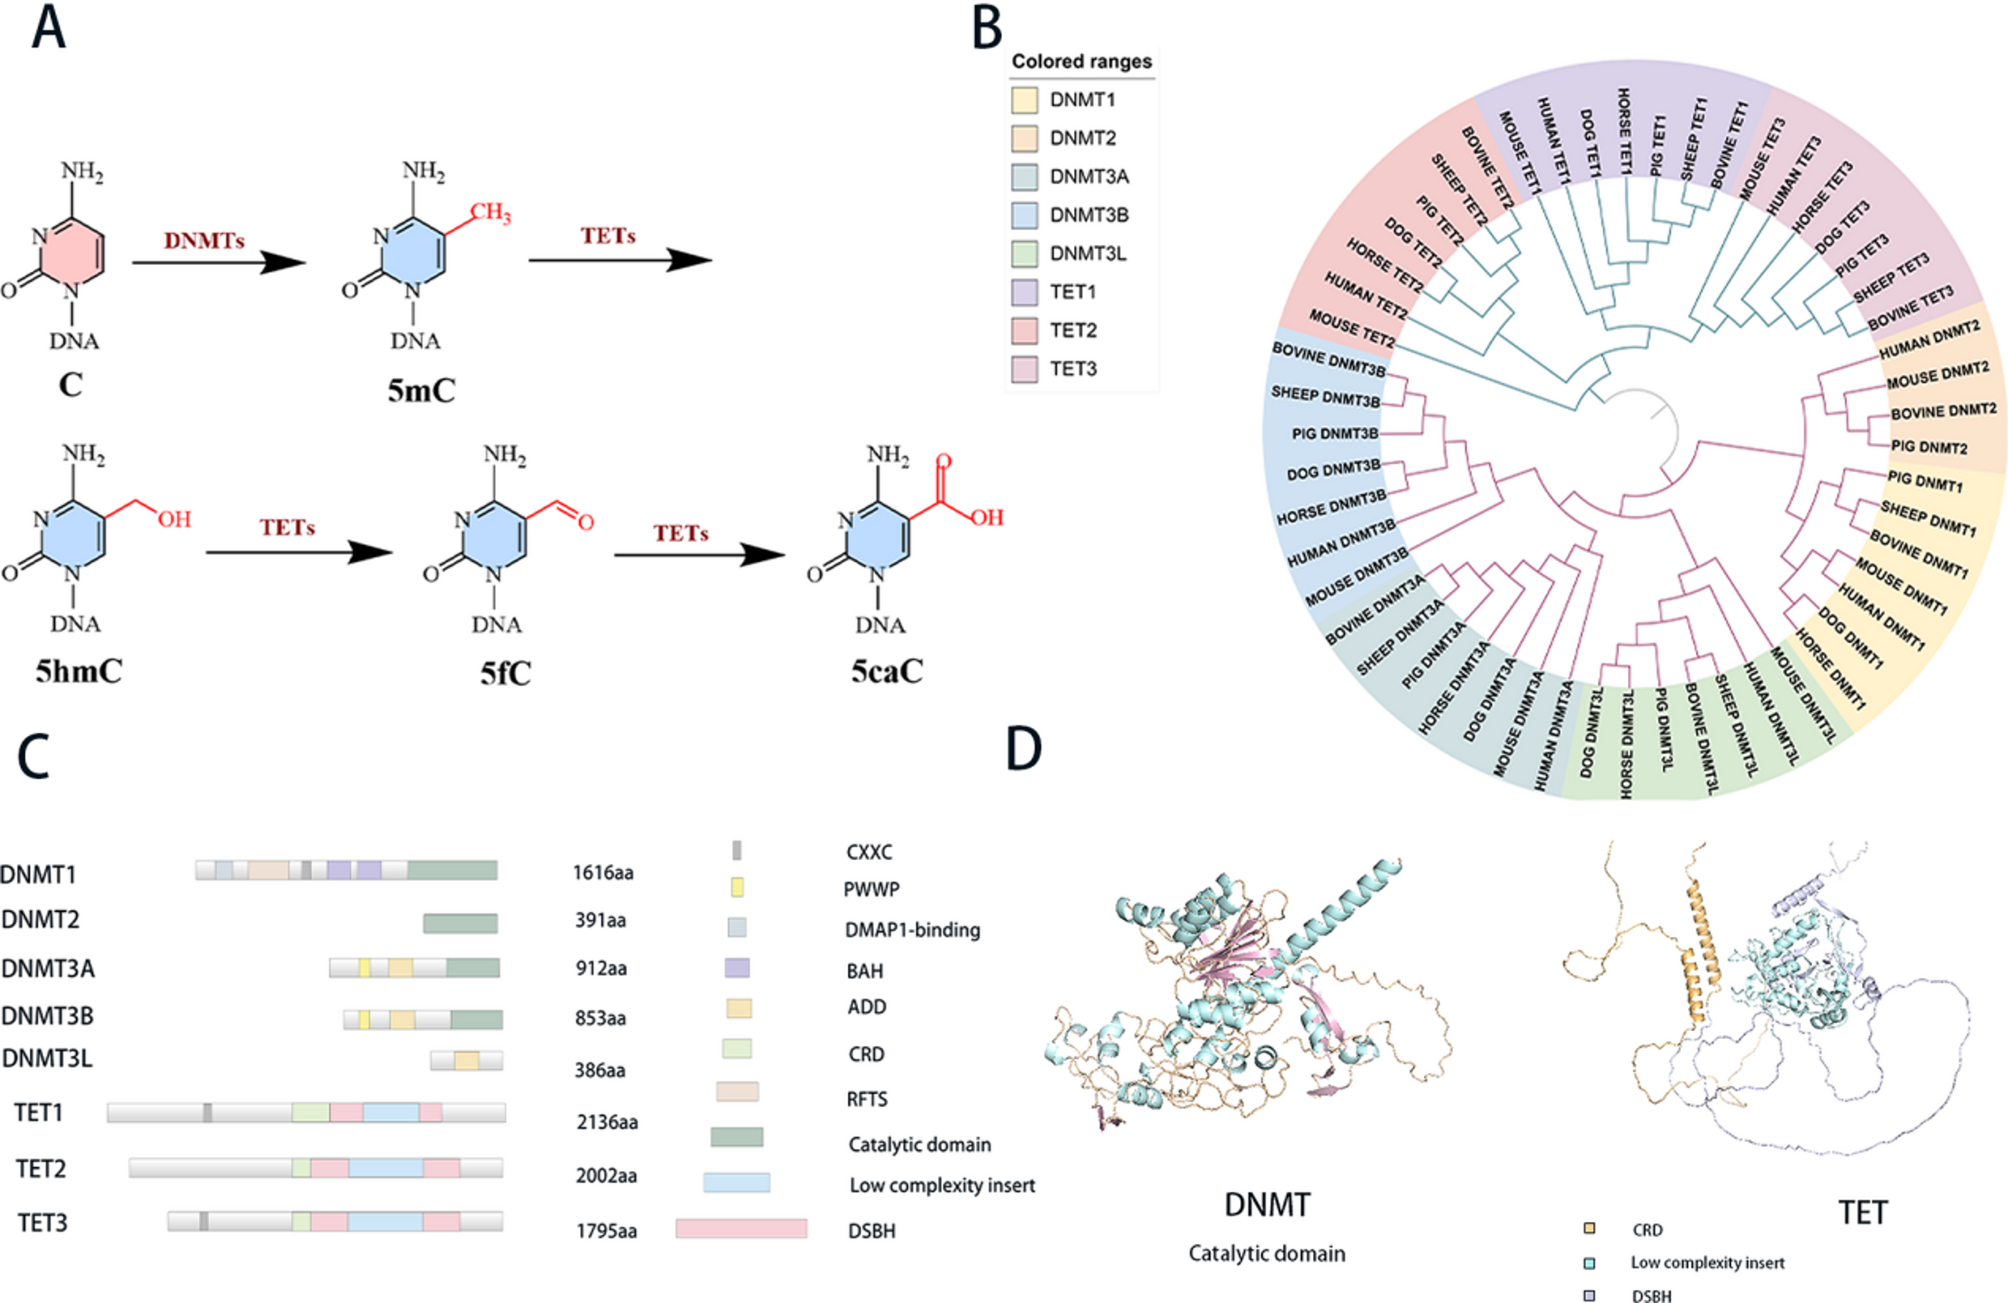
Semua DNMT katalitik berbagi domain metiltransferase di ujung C; perbedaan fungsi datang dari domain regulator di ujung N (misalnya RFTS dan CXXC pada DNMT1, PWWP dan ADD pada DNMT3A/3B).
Mutasi DNMT3A termasuk yang paling sering pada leukemia mieloid akut, menunjukkan pentingnya “penulis” pola ini.
Figur: arsitektur DNMT dan TET
![Reaksi metilasi dan demetilasi, filogeni, dan arsitektur domain DNMT dan TET]()
Reaksi kimia, filogeni, dan arsitektur domain DNMT dan TET. Yang S, et al. (2025) BMC Mol Cell Biol 26:26, Fig. 1. CC BY 4.0.
Pemeliharaan: menyalin pola saat replikasi
- Replikasi menghasilkan DNA hemimetilasi: untai induk termetilasi, untai baru belum
- UHRF1 mengenali CpG hemimetilasi lewat domain SRA
- UHRF1 mengubikuitinasi histon H3 (K18 dan K23), menjadi “landasan” DNMT1
- DNMT1 direkrut ke garpu replikasi (bersama PCNA) dan memetilasi untai baru
Hasil: pola induk tersalin ke kedua sel anak. Inilah dasar molekuler sifat heritabel.
Pemeliharaan berlangsung dua fase: cepat, terkopel replikasi (menit), dan lambat, pasca-replikasi (jam) (Petryk et al., 2021).
Simetri CpG memungkinkan informasi ini disalin, mirip replikasi semi-konservatif.
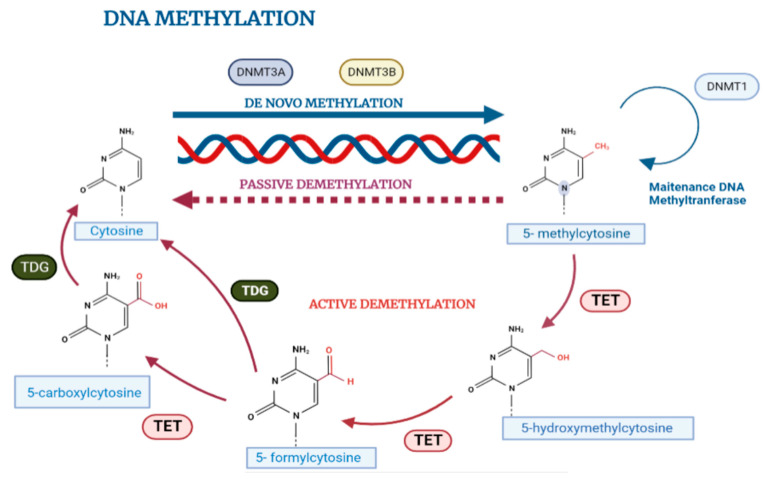
Figur: siklus pemeliharaan dan penghapusan
![Pemeliharaan metilasi oleh DNMT dan penghapusan oleh TET pada sel normal]()
Pemeliharaan (DNMT1/UHRF1) dan penghapusan (TET) tanda metilasi pada sel normal. Heredia-Mendez AJ, et al. (2023) Cancers 15:1991, Fig. 3. CC BY 4.0.
Penghapusan metilasi
Pasif: DNMT1 tidak bekerja beberapa putaran replikasi, metilasi terencerkan setengahnya tiap pembelahan.
Aktif (jalur TET)
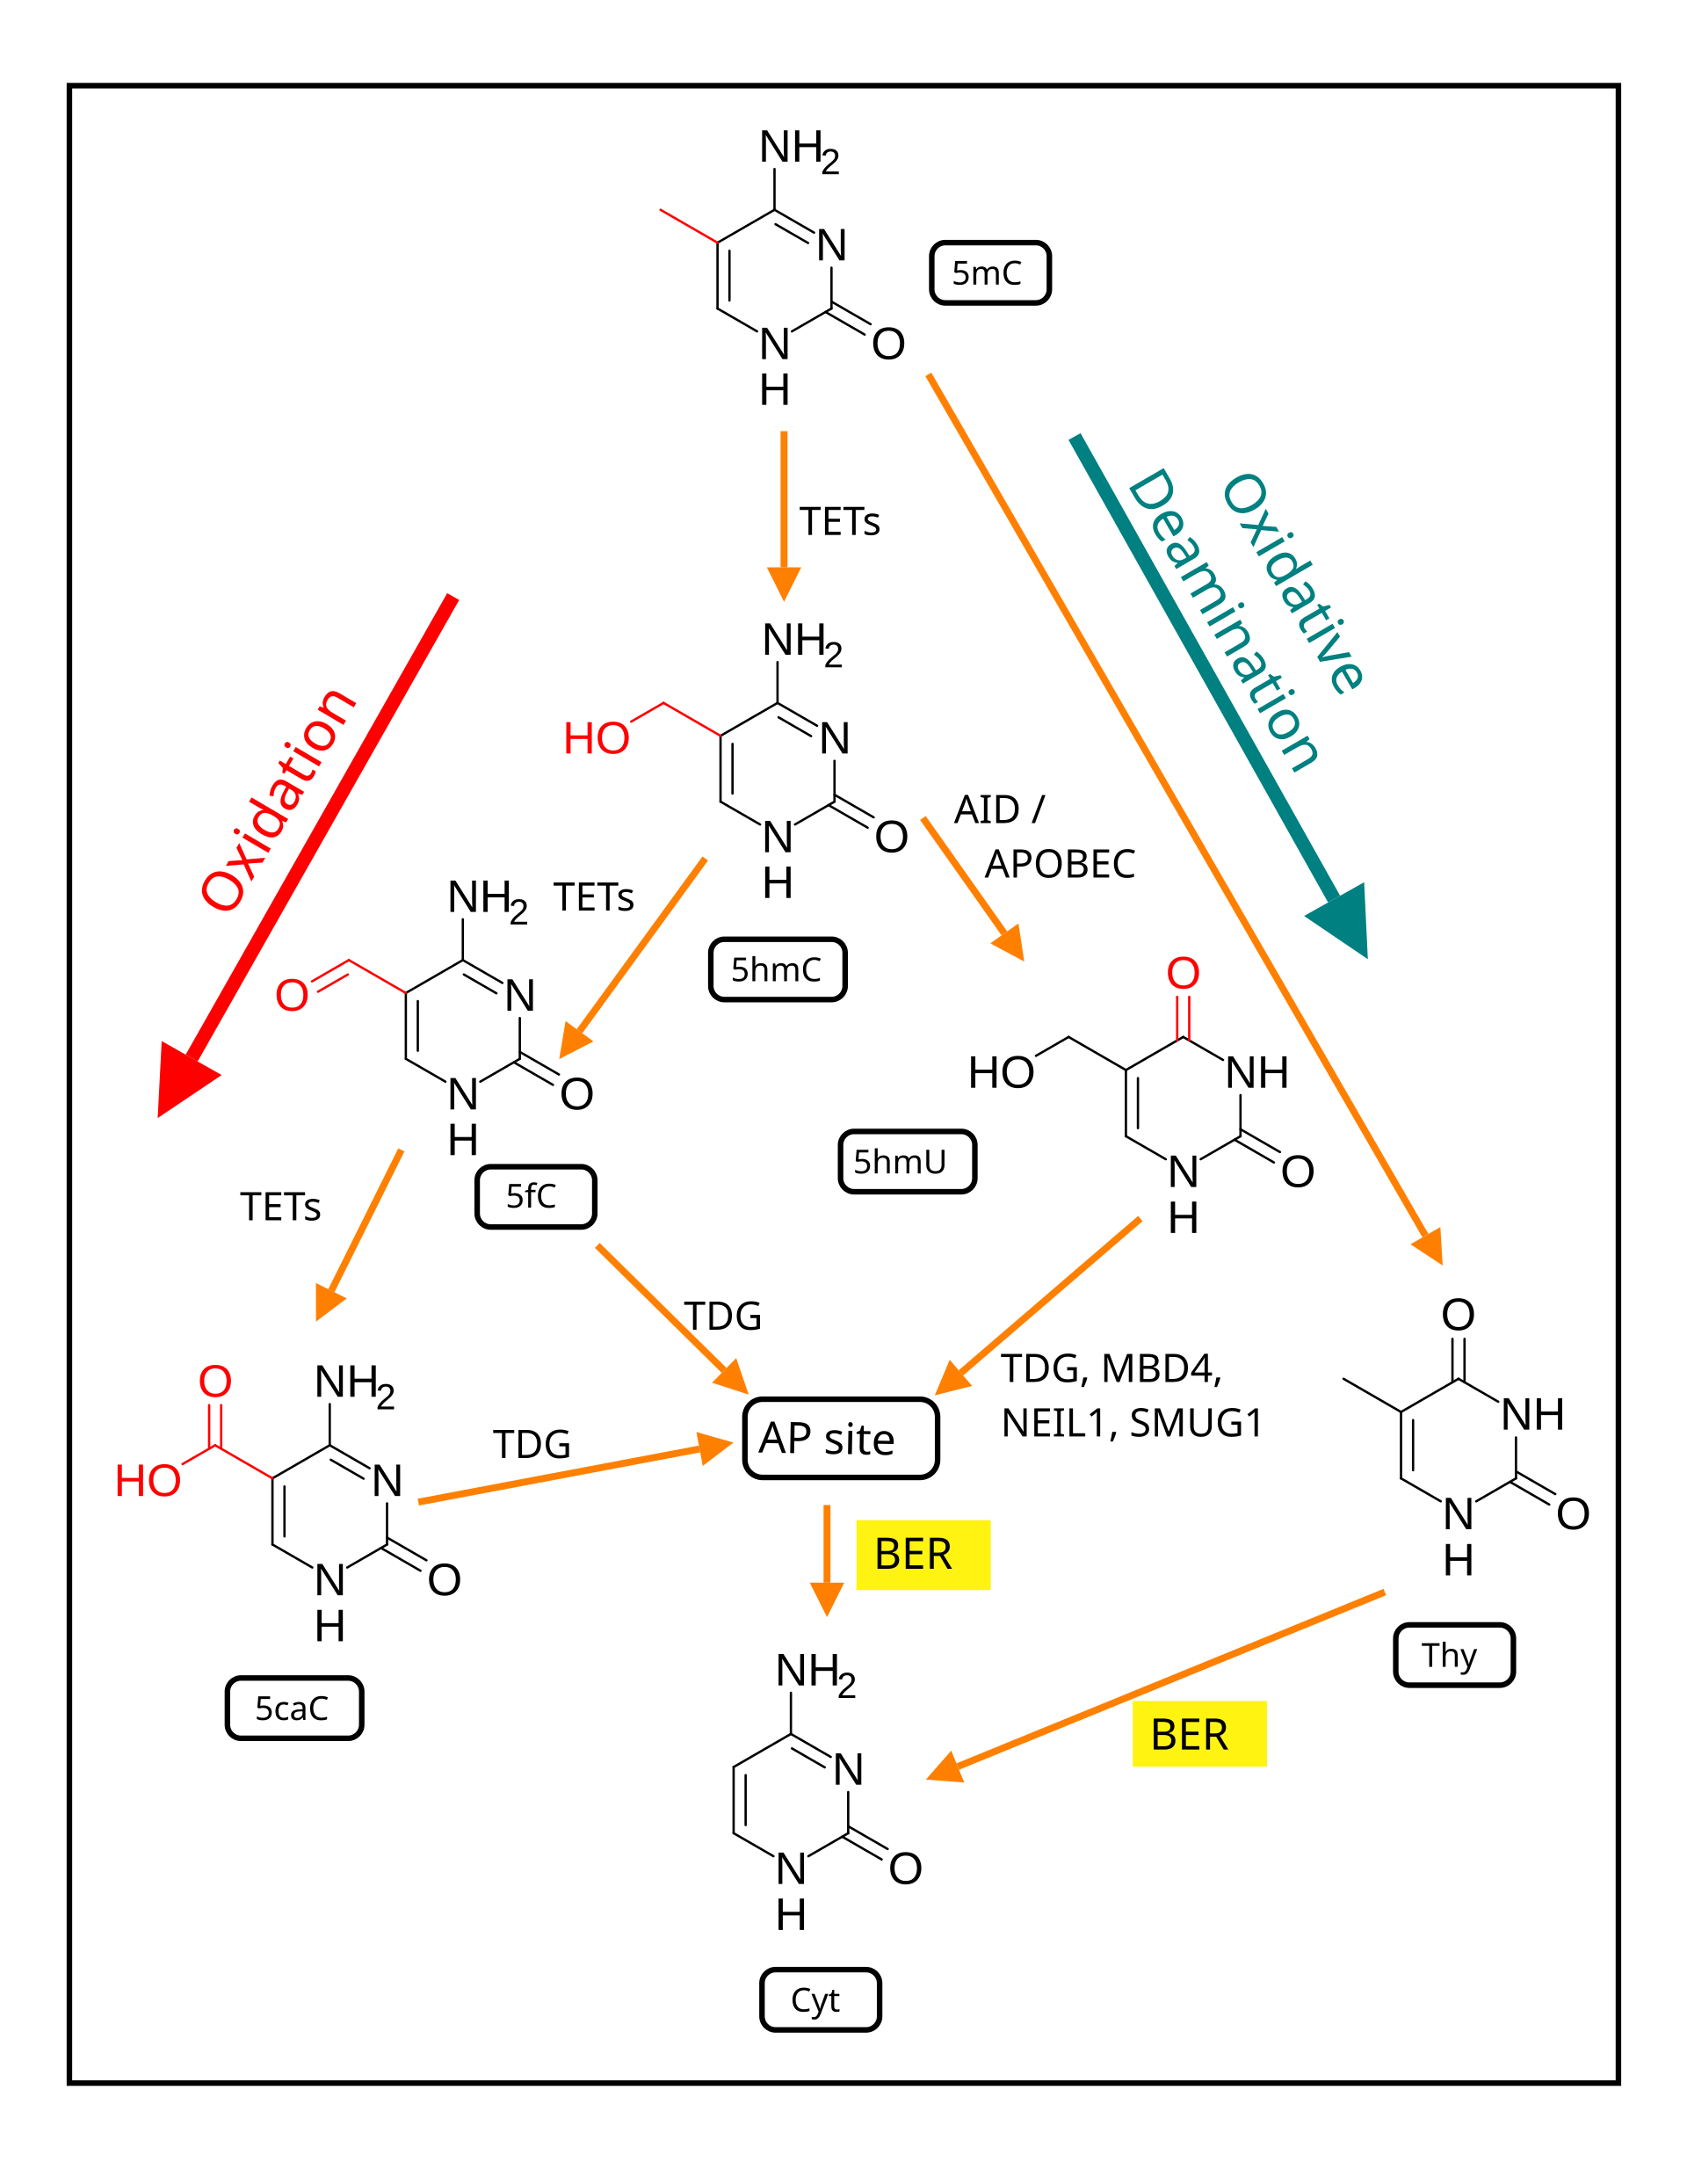
- TET1 sampai TET3 mengoksidasi 5mC bertahap: 5mC, 5hmC, 5fC, 5caC
- Butuh Fe2+ dan alfa-ketoglutarat
- TDG memotong 5fC atau 5caC
- BER memasang kembali sitosin
Kaitkan dengan Pertemuan 5: demetilasi aktif memakai mesin perbaikan eksisi basa.
![Jalur oksidasi 5-metilsitosin oleh TET dan eksisi oleh TDG]()
Demetilasi 5-metilsitosin lewat oksidasi bertahap. Sumber: Wikimedia Commons.
Bagaimana metilasi membungkam gen
1. Menghalangi langsung
Sebagian faktor transkripsi dan protein pengikat DNA tidak dapat menempel pada urutan termetilasi. Contoh penting: CTCF.
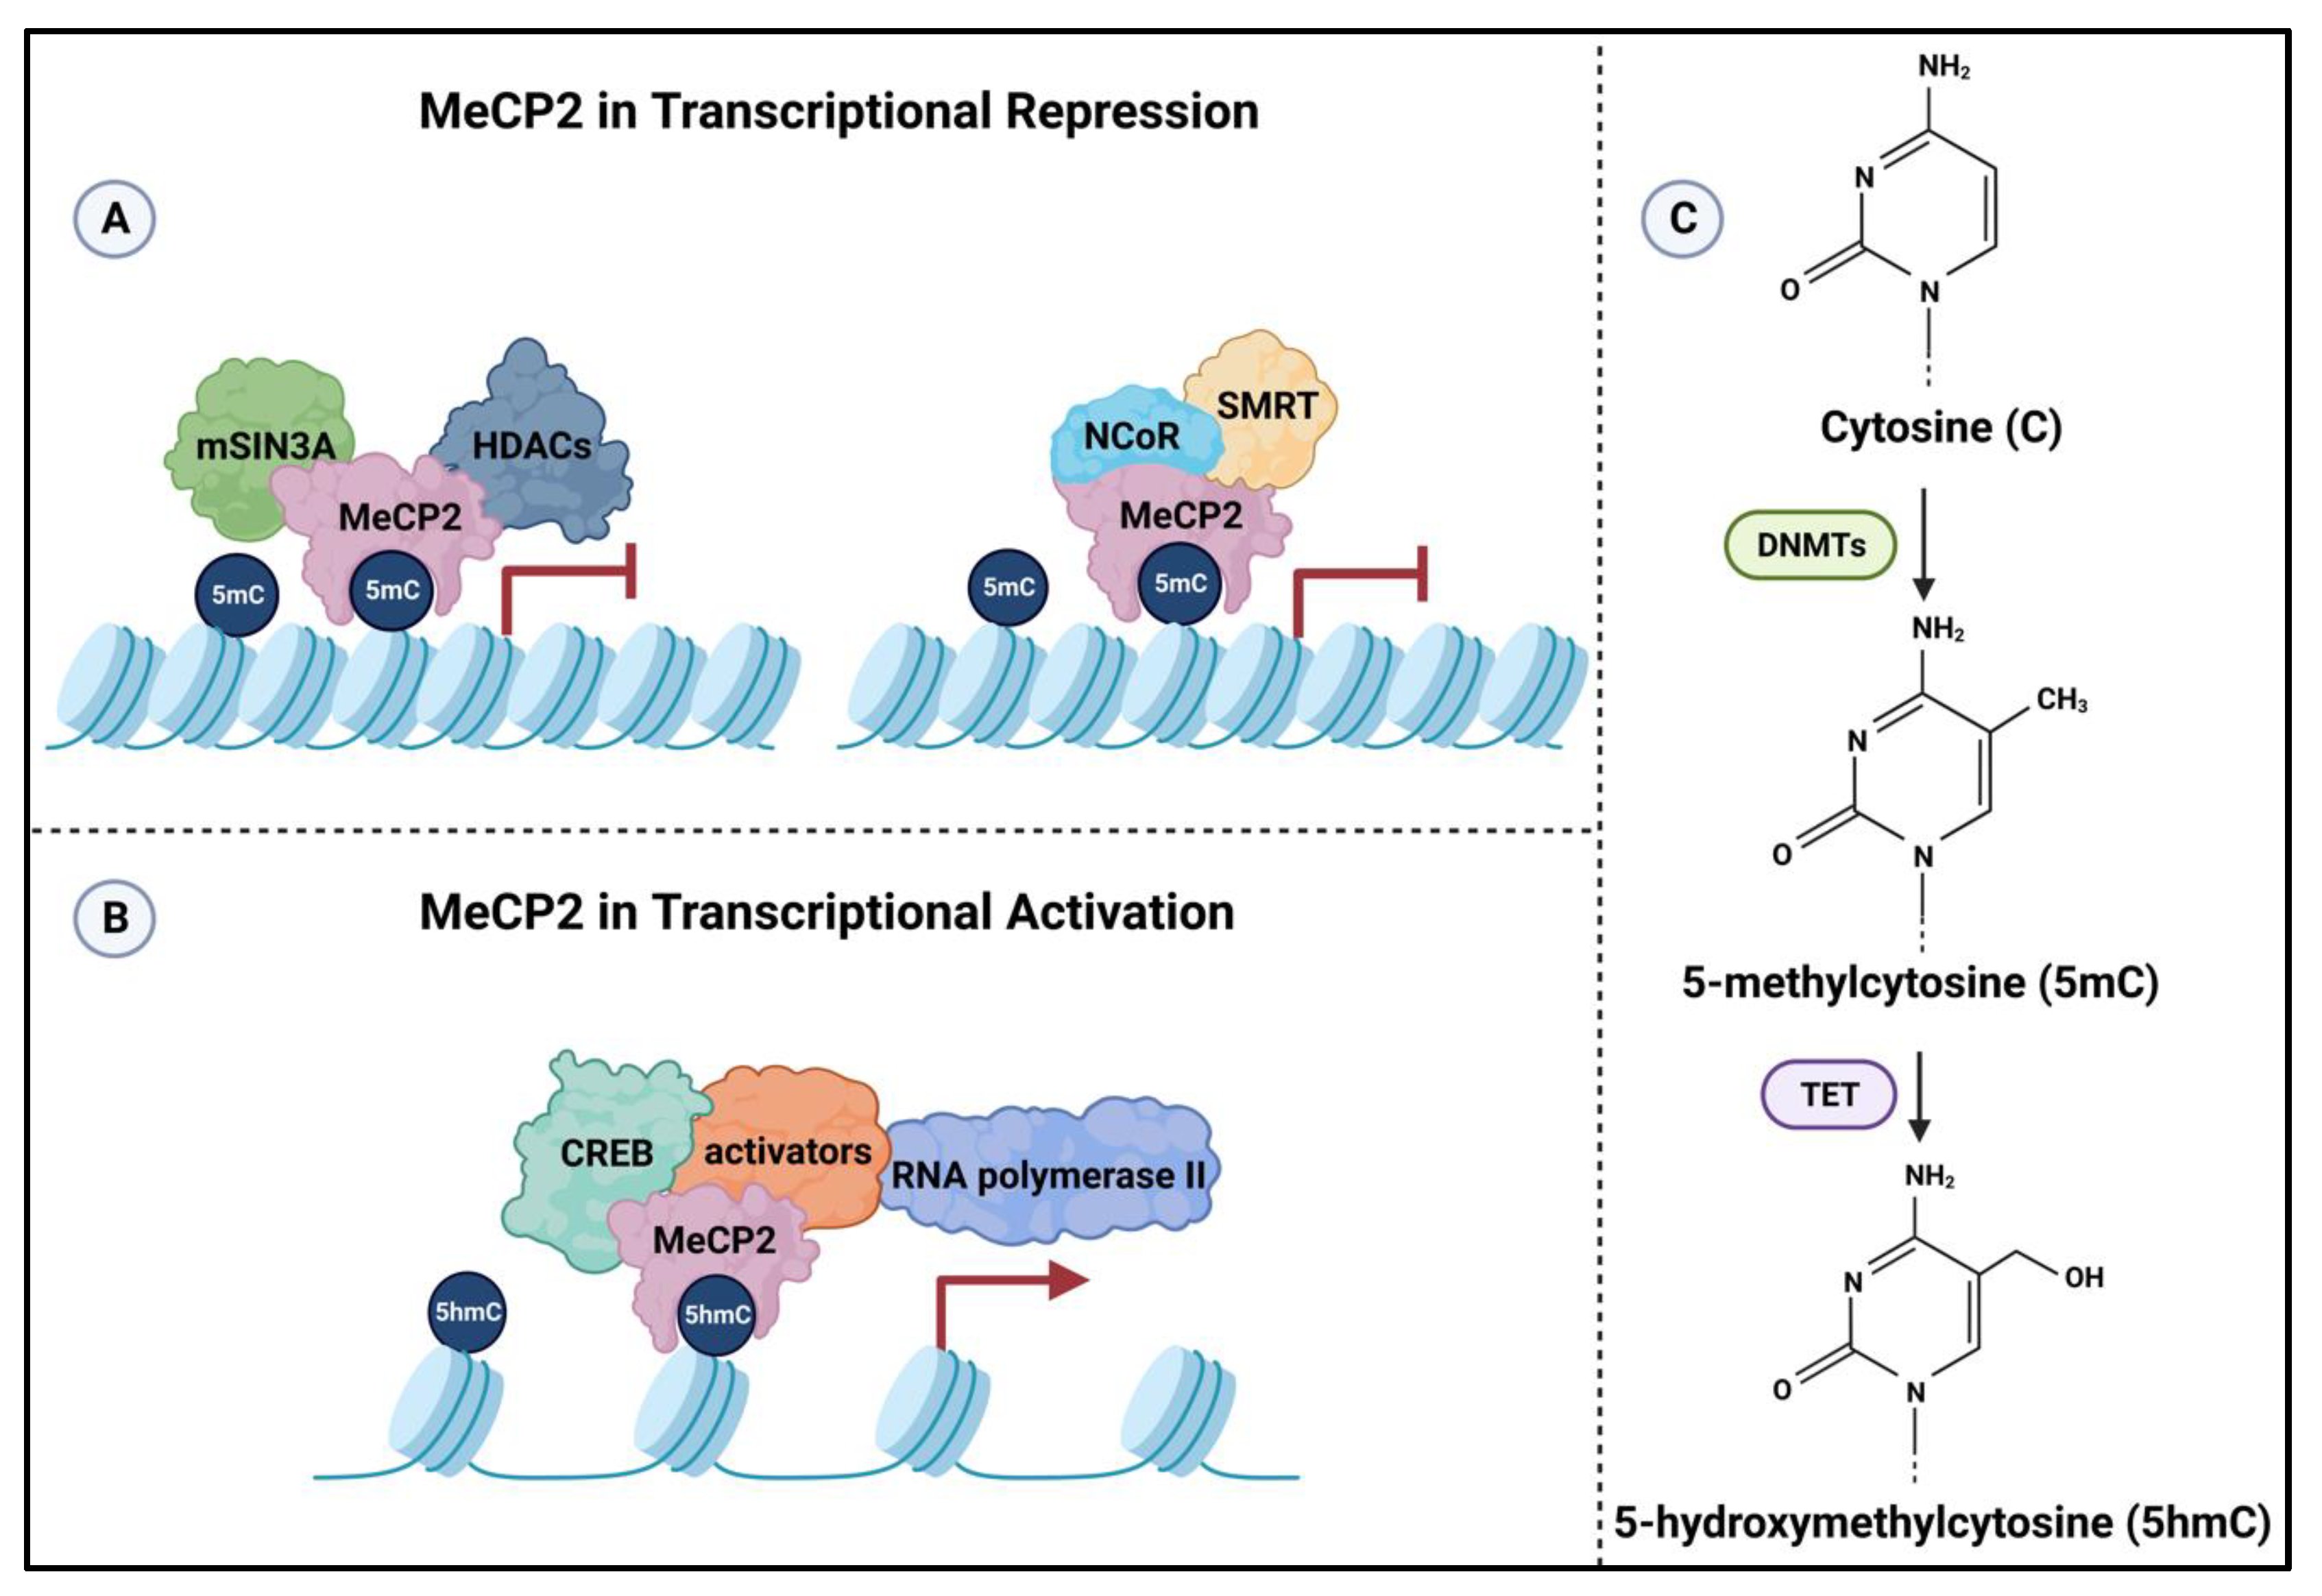
2. Merekrut pembaca
- Protein MBD, misalnya MeCP2, mengenali 5mC
- MBD merekrut korepresor (Sin3A, NuRD) yang membawa HDAC
- Histon terdeasetilasi, kromatin memadat, gen terkunci bungkam
Mutasi MECP2 menyebabkan sindrom Rett: “membaca” metilasi sama pentingnya dengan “menulisnya”.
![Peran ganda MeCP2: represi lewat 5mC dan aktivasi lewat 5hmC]()
Peran ganda MeCP2 pada 5mC dan 5hmC. Vuu YM, et al. (2023) Int J Mol Sci 24:4218, Fig. 2. CC BY 3.0.
Lokasi menentukan makna
Metilasi tidak selalu berarti “gen mati”:
| Promotor / CpG island |
Umumnya membungkam transkripsi |
| Badan gen (gene body) |
Sering berkorelasi dengan transkripsi aktif |
| Elemen repetitif dan transposon |
Menjaga agar tetap bungkam, melindungi stabilitas genom |
| Enhancer |
Memodulasi aktivitas regulasi jarak jauh |
Pola metilasi juga khas tipe sel: atlas metilom 39 tipe sel manusia menunjukkan tiap sel punya “sidik jari” metilasi sendiri (Loyfer et al., 2023). Prinsip ini menjadi dasar biopsi cair.
Imprinting genom: kasus H19/IGF2
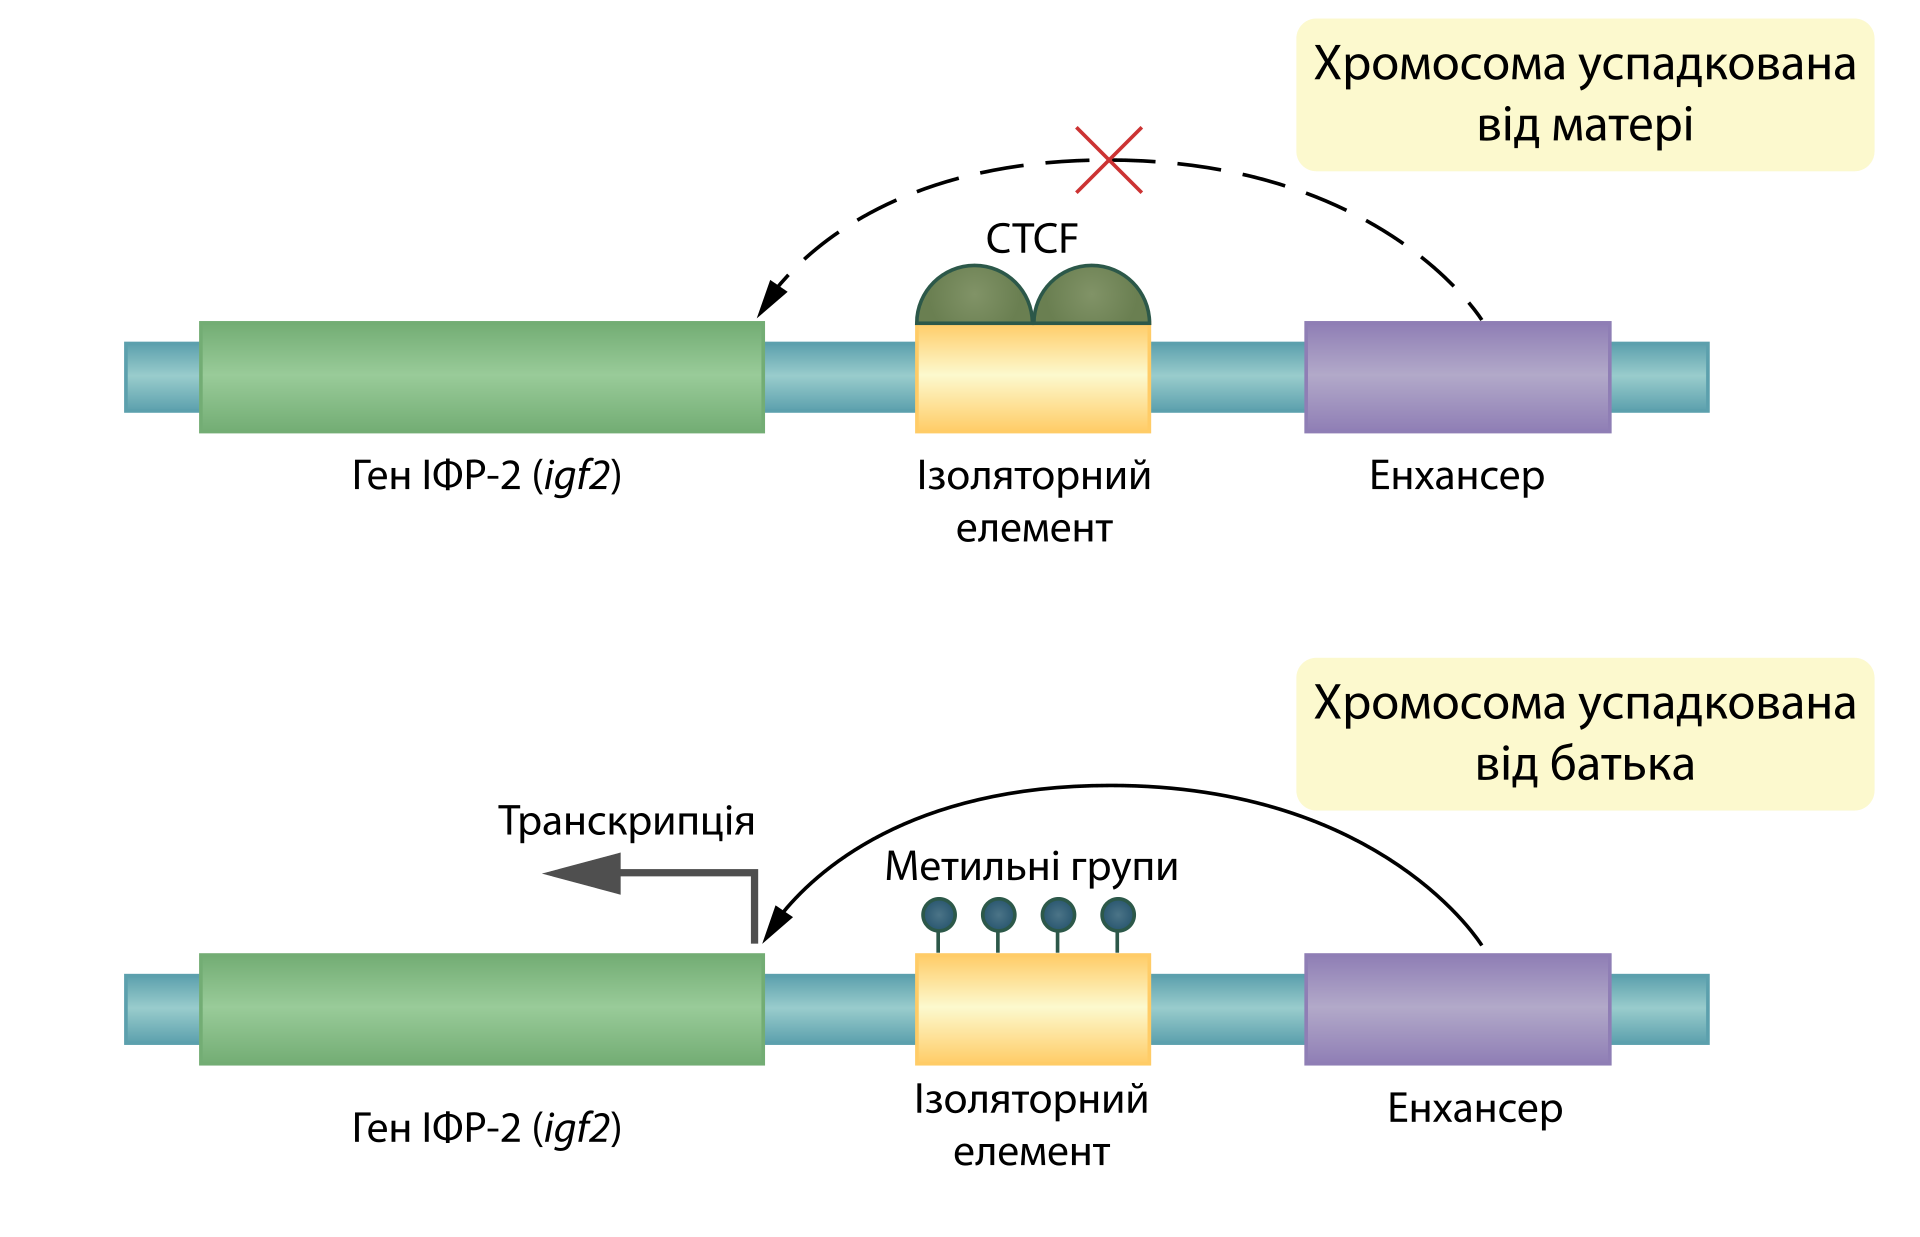
Pada 11p15, IGF2 dan H19 berbagi enhancer. Di antaranya ada ICR1.
- Alel maternal: ICR1 tidak termetilasi, CTCF mengikat dan menjadi insulator. Enhancer hanya mengaktifkan H19
- Alel paternal: ICR1 termetilasi, CTCF tidak dapat mengikat. Enhancer mengaktifkan IGF2
Gangguan metilasi ICR1:
- Hipermetilasi: Beckwith-Wiedemann (pertumbuhan berlebih)
- Hipometilasi: Silver-Russell (hambatan pertumbuhan)
Lokus yang sama juga terganggu (loss of imprinting) pada berbagai tumor (Ortega et al., 2026).
![Imprinting IGF2 dan H19: CTCF sebagai insulator pada alel maternal]()
Mekanisme imprinting Igf2/H19. Sumber: Wikimedia Commons.
Inaktivasi kromosom X
- Pada sel betina, satu X dibungkam untuk menyetarakan dosis gen
- Diawali lncRNA XIST yang menyelubungi X target (Pertemuan 4)
- Tahap akhir: metilasi CpG island pada X inaktif mengunci keadaan bungkam
- Pilihan X bersifat acak per sel, lalu diwariskan ke sel keturunan
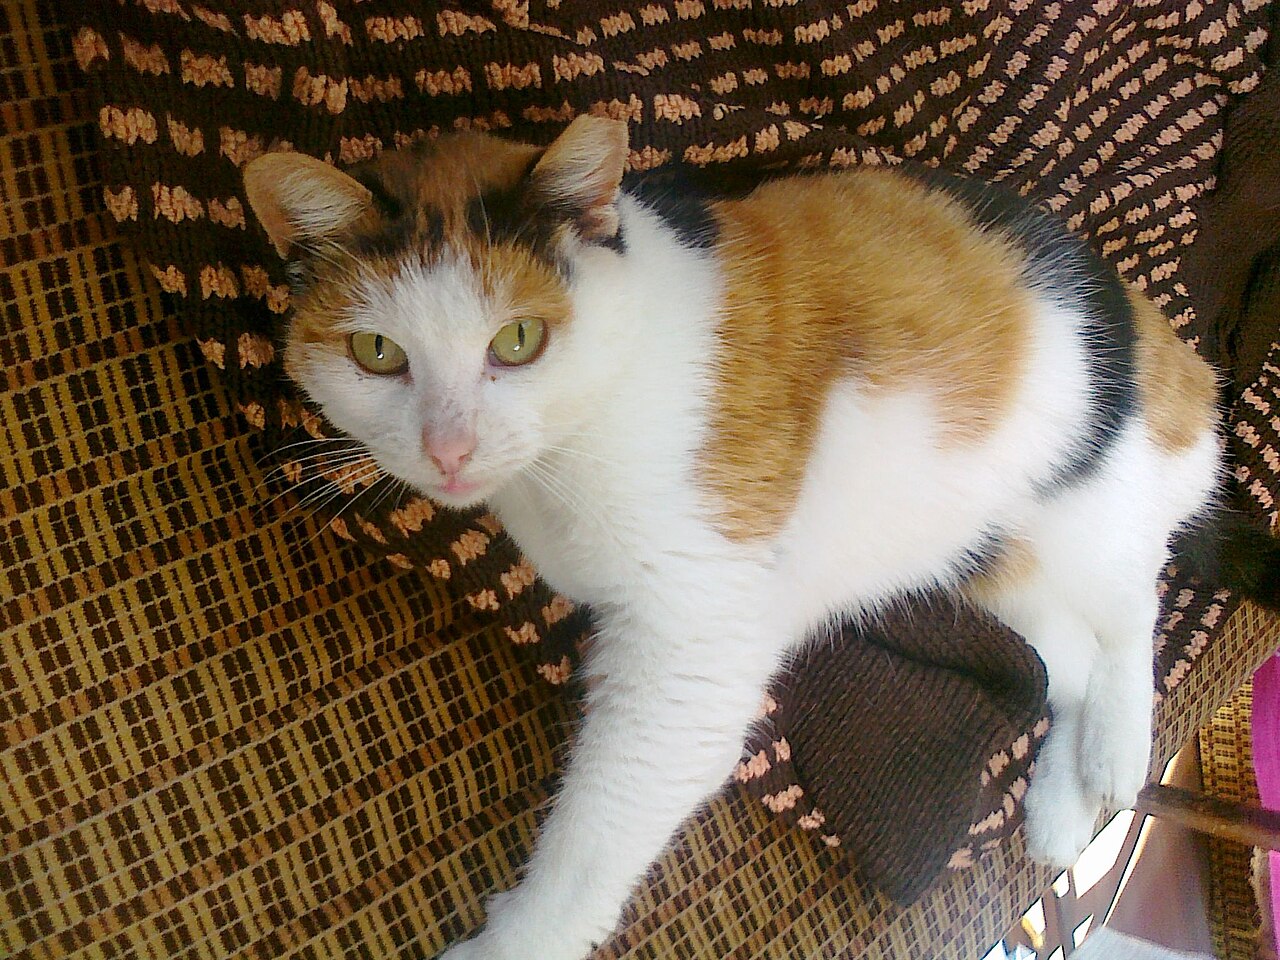
Bukti yang terlihat: kucing calico hampir selalu betina. Gen warna oranye/hitam ada di X, sehingga inaktivasi acak menghasilkan mosaik bercak warna.
![Kucing calico dengan bercak warna mosaik]()
Kucing calico: mosaik inaktivasi X. Sumber: Wikimedia Commons.
Metilasi dan kanker
Dua perubahan terjadi bersamaan:
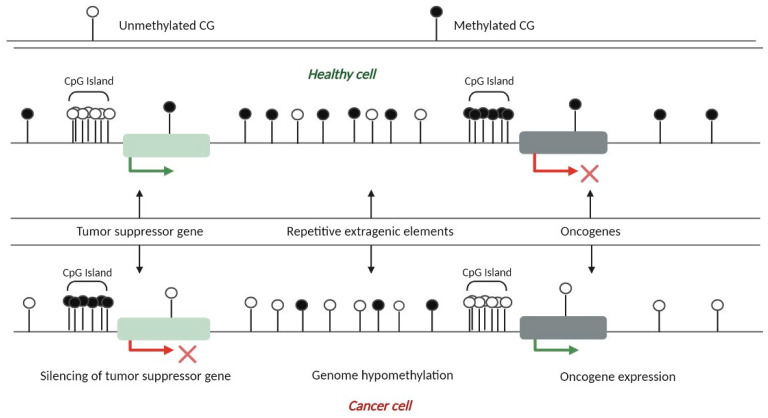
- Hipometilasi global: transposon aktif kembali, genom tidak stabil
- Hipermetilasi fokal pada promotor gen penekan tumor
Contoh klinis:
- MLH1: hipermetilasi promotor menyebabkan kanker kolorektal MSI-tinggi sporadis, berbeda dari sindrom Lynch akibat mutasi germline (MMR, Pertemuan 5)
- MGMT: promotor termetilasi pada glioblastoma membuat sel gagal memperbaiki kerusakan akibat temozolomid, sehingga obat lebih efektif (Hegi et al., 2005)
- IDH1/2 mutan: 2-hidroksiglutarat menghambat TET, memicu hipermetilasi luas
Figur: metilasi normal vs kanker
![Pola metilasi DNA pada sel normal dibanding sel kanker]()
Hipometilasi global dan hipermetilasi promotor pada sel kanker. Heredia-Mendez AJ, et al. (2023) Cancers 15:1991, Fig. 4. CC BY 4.0.
Terapi: menghapus metilasi yang keliru
Azasitidin dan desitabin adalah analog nukleosida:
- Terinkorporasi ke DNA saat replikasi, menggantikan sitosin
- DNMT mencoba memetilasinya dan membentuk ikatan kovalen (langkah 3 reaksi)
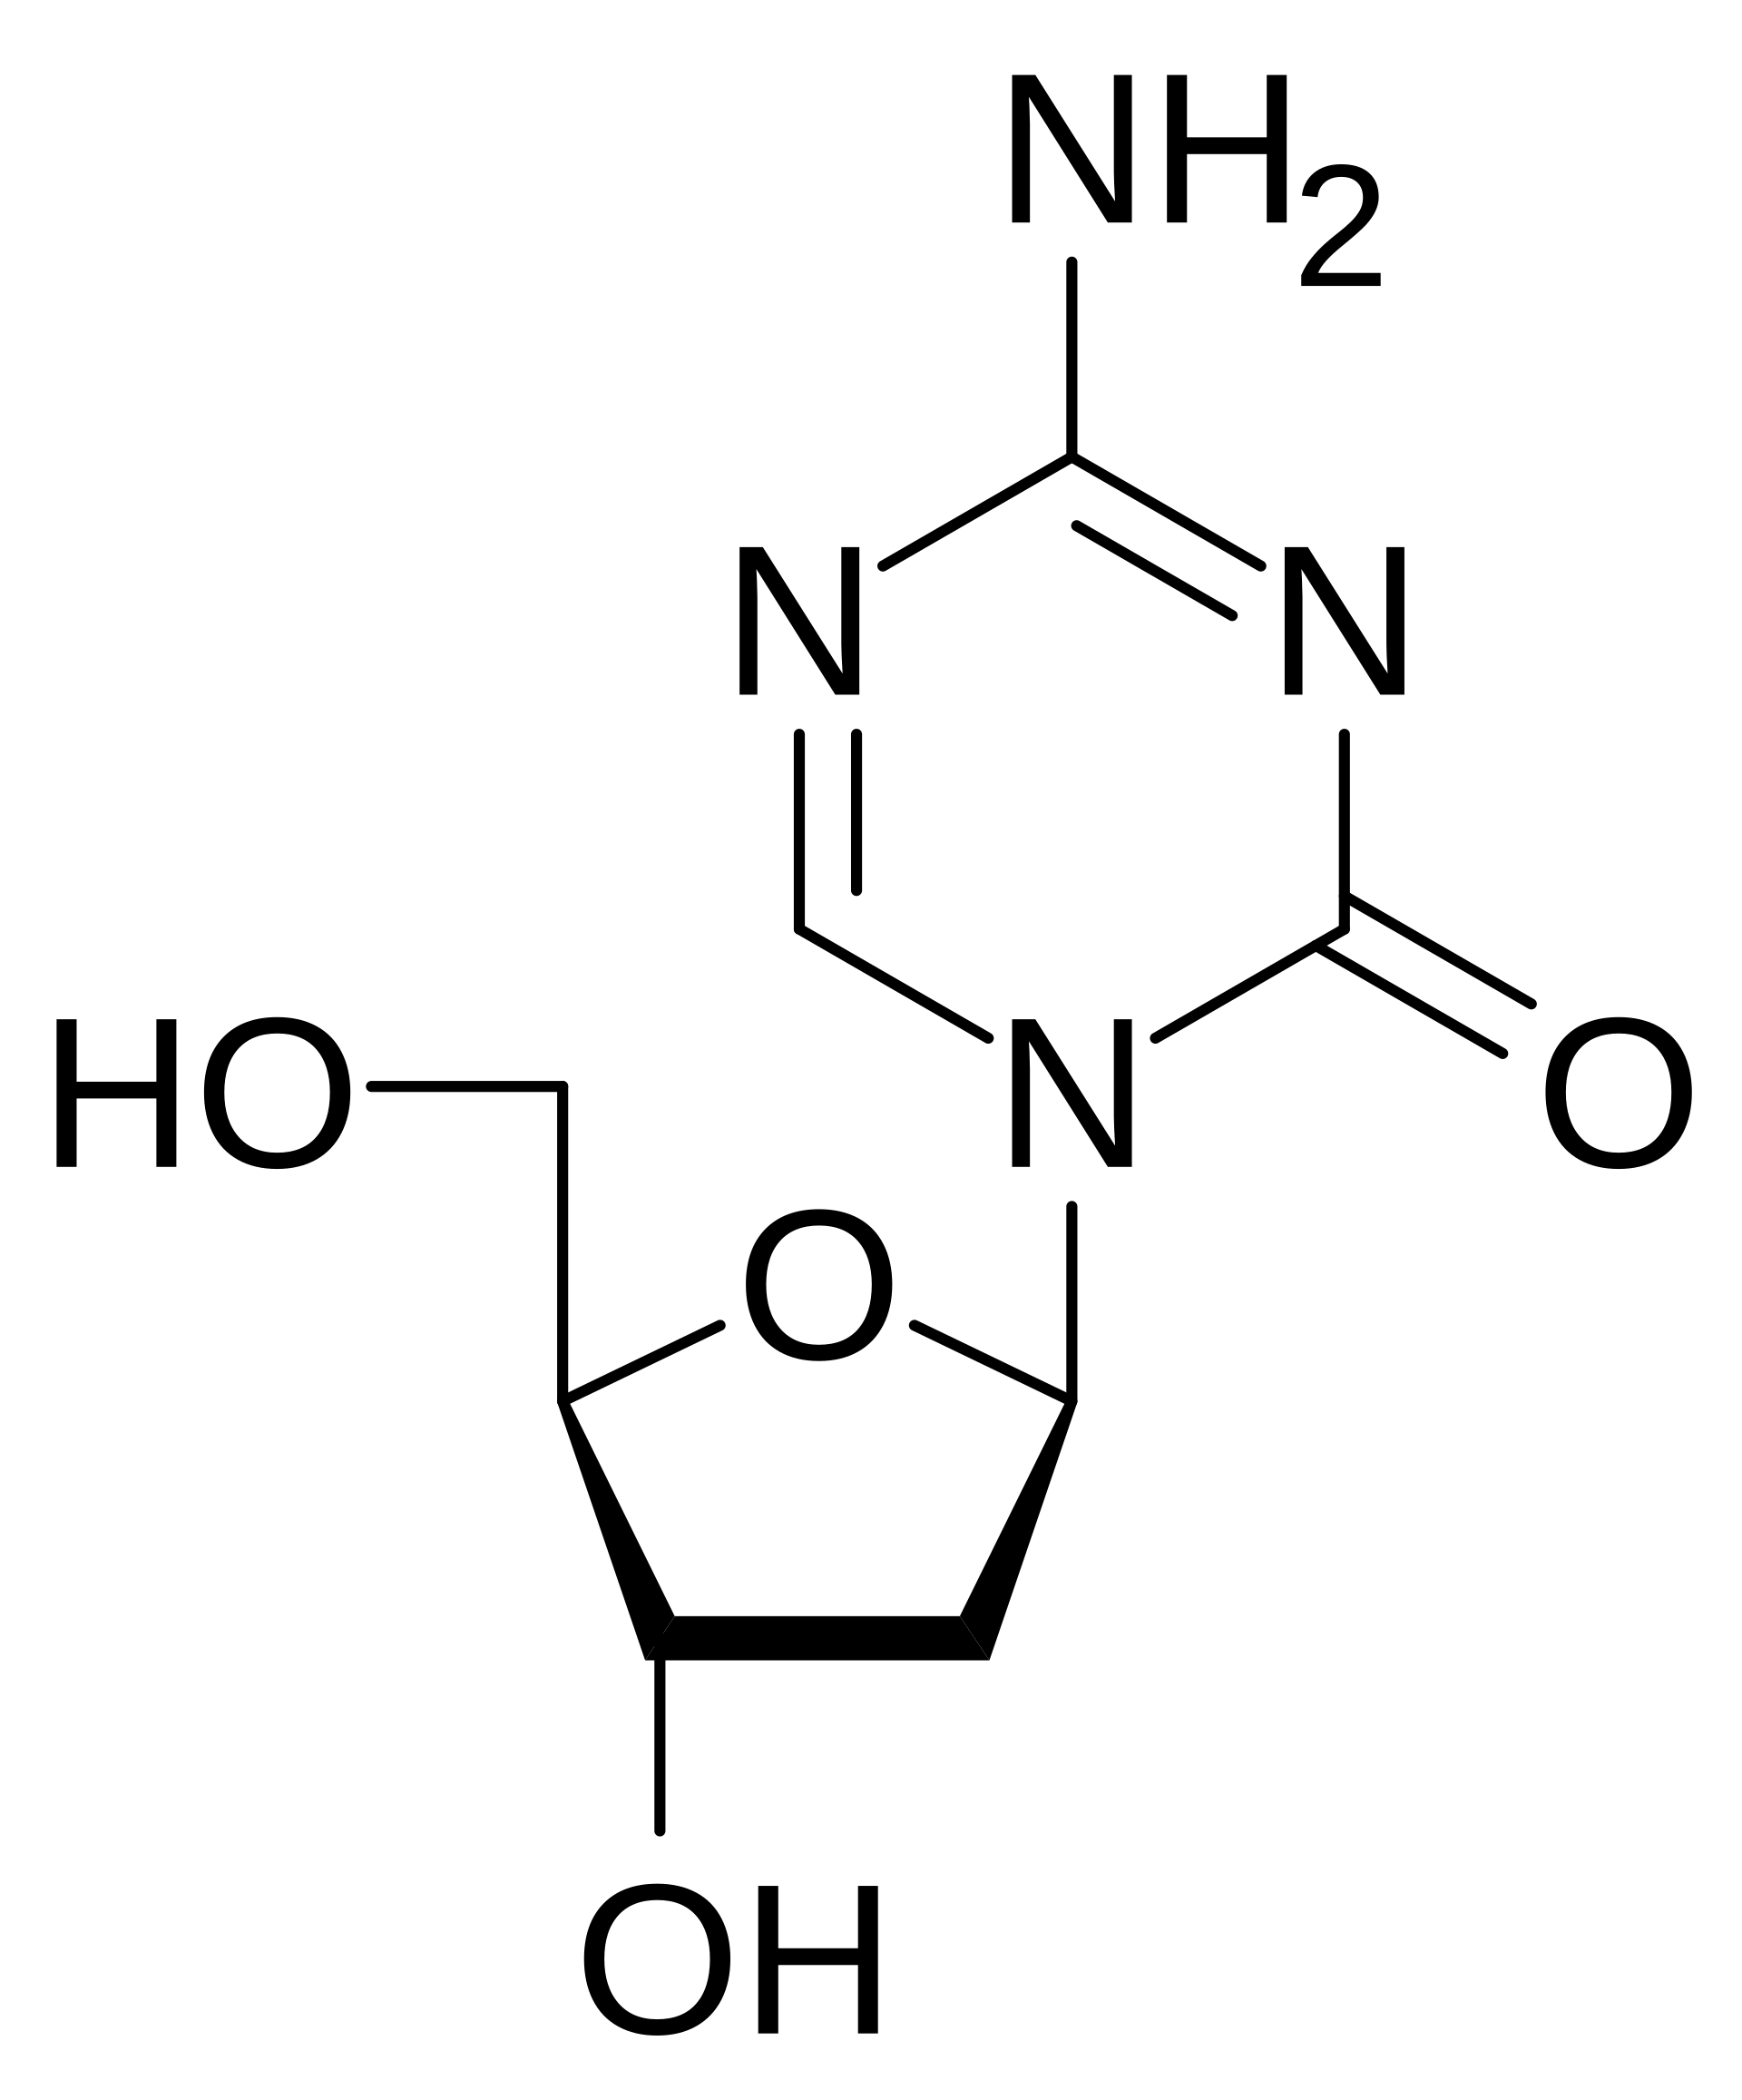
- Karena N5 menggantikan C5, reaksi tidak dapat selesai. DNMT terperangkap dan didegradasi
- Tanpa DNMT, metilasi hilang secara pasif pada replikasi berikutnya
Dipakai pada sindrom mielodisplastik dan leukemia mieloid akut.
Memahami langkah kimia reaksi DNMT menjelaskan persis mengapa obat ini bekerja.
![Struktur kimia desitabin]()
Desitabin: nitrogen menggantikan C5 cincin sitosin. Sumber: Wikimedia Commons.
Gizi dan metilasi
Metilasi bergantung pada pasokan SAM dari metabolisme satu-karbon (folat, B12, metionin, kolin).
- Tikus agouti viable yellow (Avy): suplementasi donor metil pada induk hamil meningkatkan metilasi transposon di hulu gen agouti, menggeser warna bulu anak dan menurunkan kecenderungan obesitas (Waterland dan Jirtle, 2003)
- Dutch Hunger Winter: paparan kelaparan prenatal dikaitkan dengan metilasi IGF2 lebih rendah sekitar enam dekade kemudian (Heijmans et al., 2008)
Lingkungan awal kehidupan dapat meninggalkan jejak molekuler yang bertahan lama. Relevan untuk kajian gizi dan herbal (Pertemuan 13).
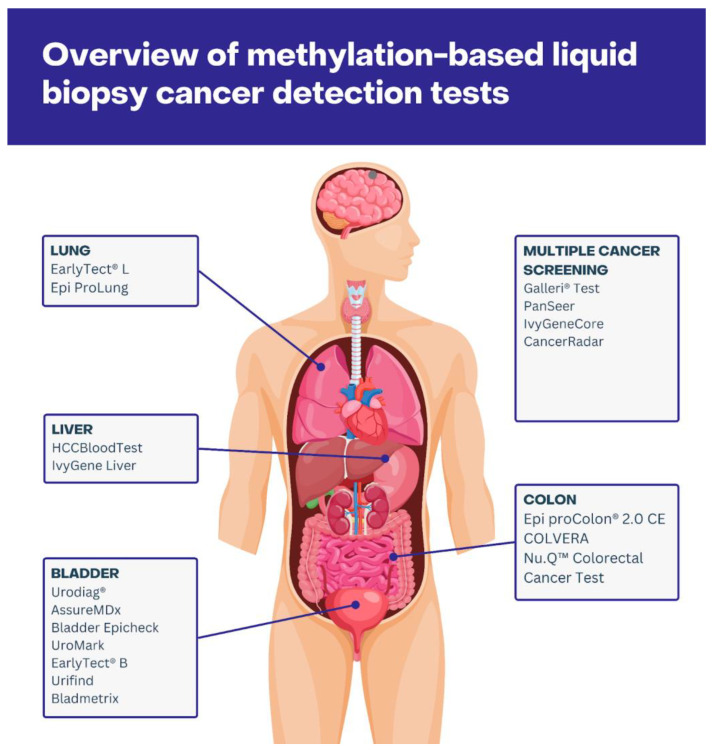
Metilasi sebagai biomarker: biopsi cair
- Sel yang mati melepas DNA ke plasma (cfDNA), membawa pola metilasi asal jaringannya
- Karena pola metilasi khas tipe sel dan berubah pada kanker, cfDNA dapat mengungkap ada tidaknya kanker sekaligus asal organnya
- Contoh: uji deteksi dini multi-kanker berbasis metilasi target menunjukkan spesifisitas tinggi, dengan sensitivitas yang meningkat seiring stadium (Klein et al., 2021)
- Tantangan: kadar DNA tumor sangat rendah pada stadium awal, standardisasi pra-analitik, dan validasi klinis (Rendek et al., 2024)
Figur: lanskap uji biopsi cair berbasis metilasi
![Ikhtisar uji biopsi cair berbasis metilasi untuk multi-kanker dan organ spesifik]()
Uji biopsi cair berbasis metilasi untuk deteksi multi-kanker dan organ spesifik. Rendek T, et al. (2024) Cancers 16:2001, Fig. 1. CC BY 4.0.
Mengukur metilasi
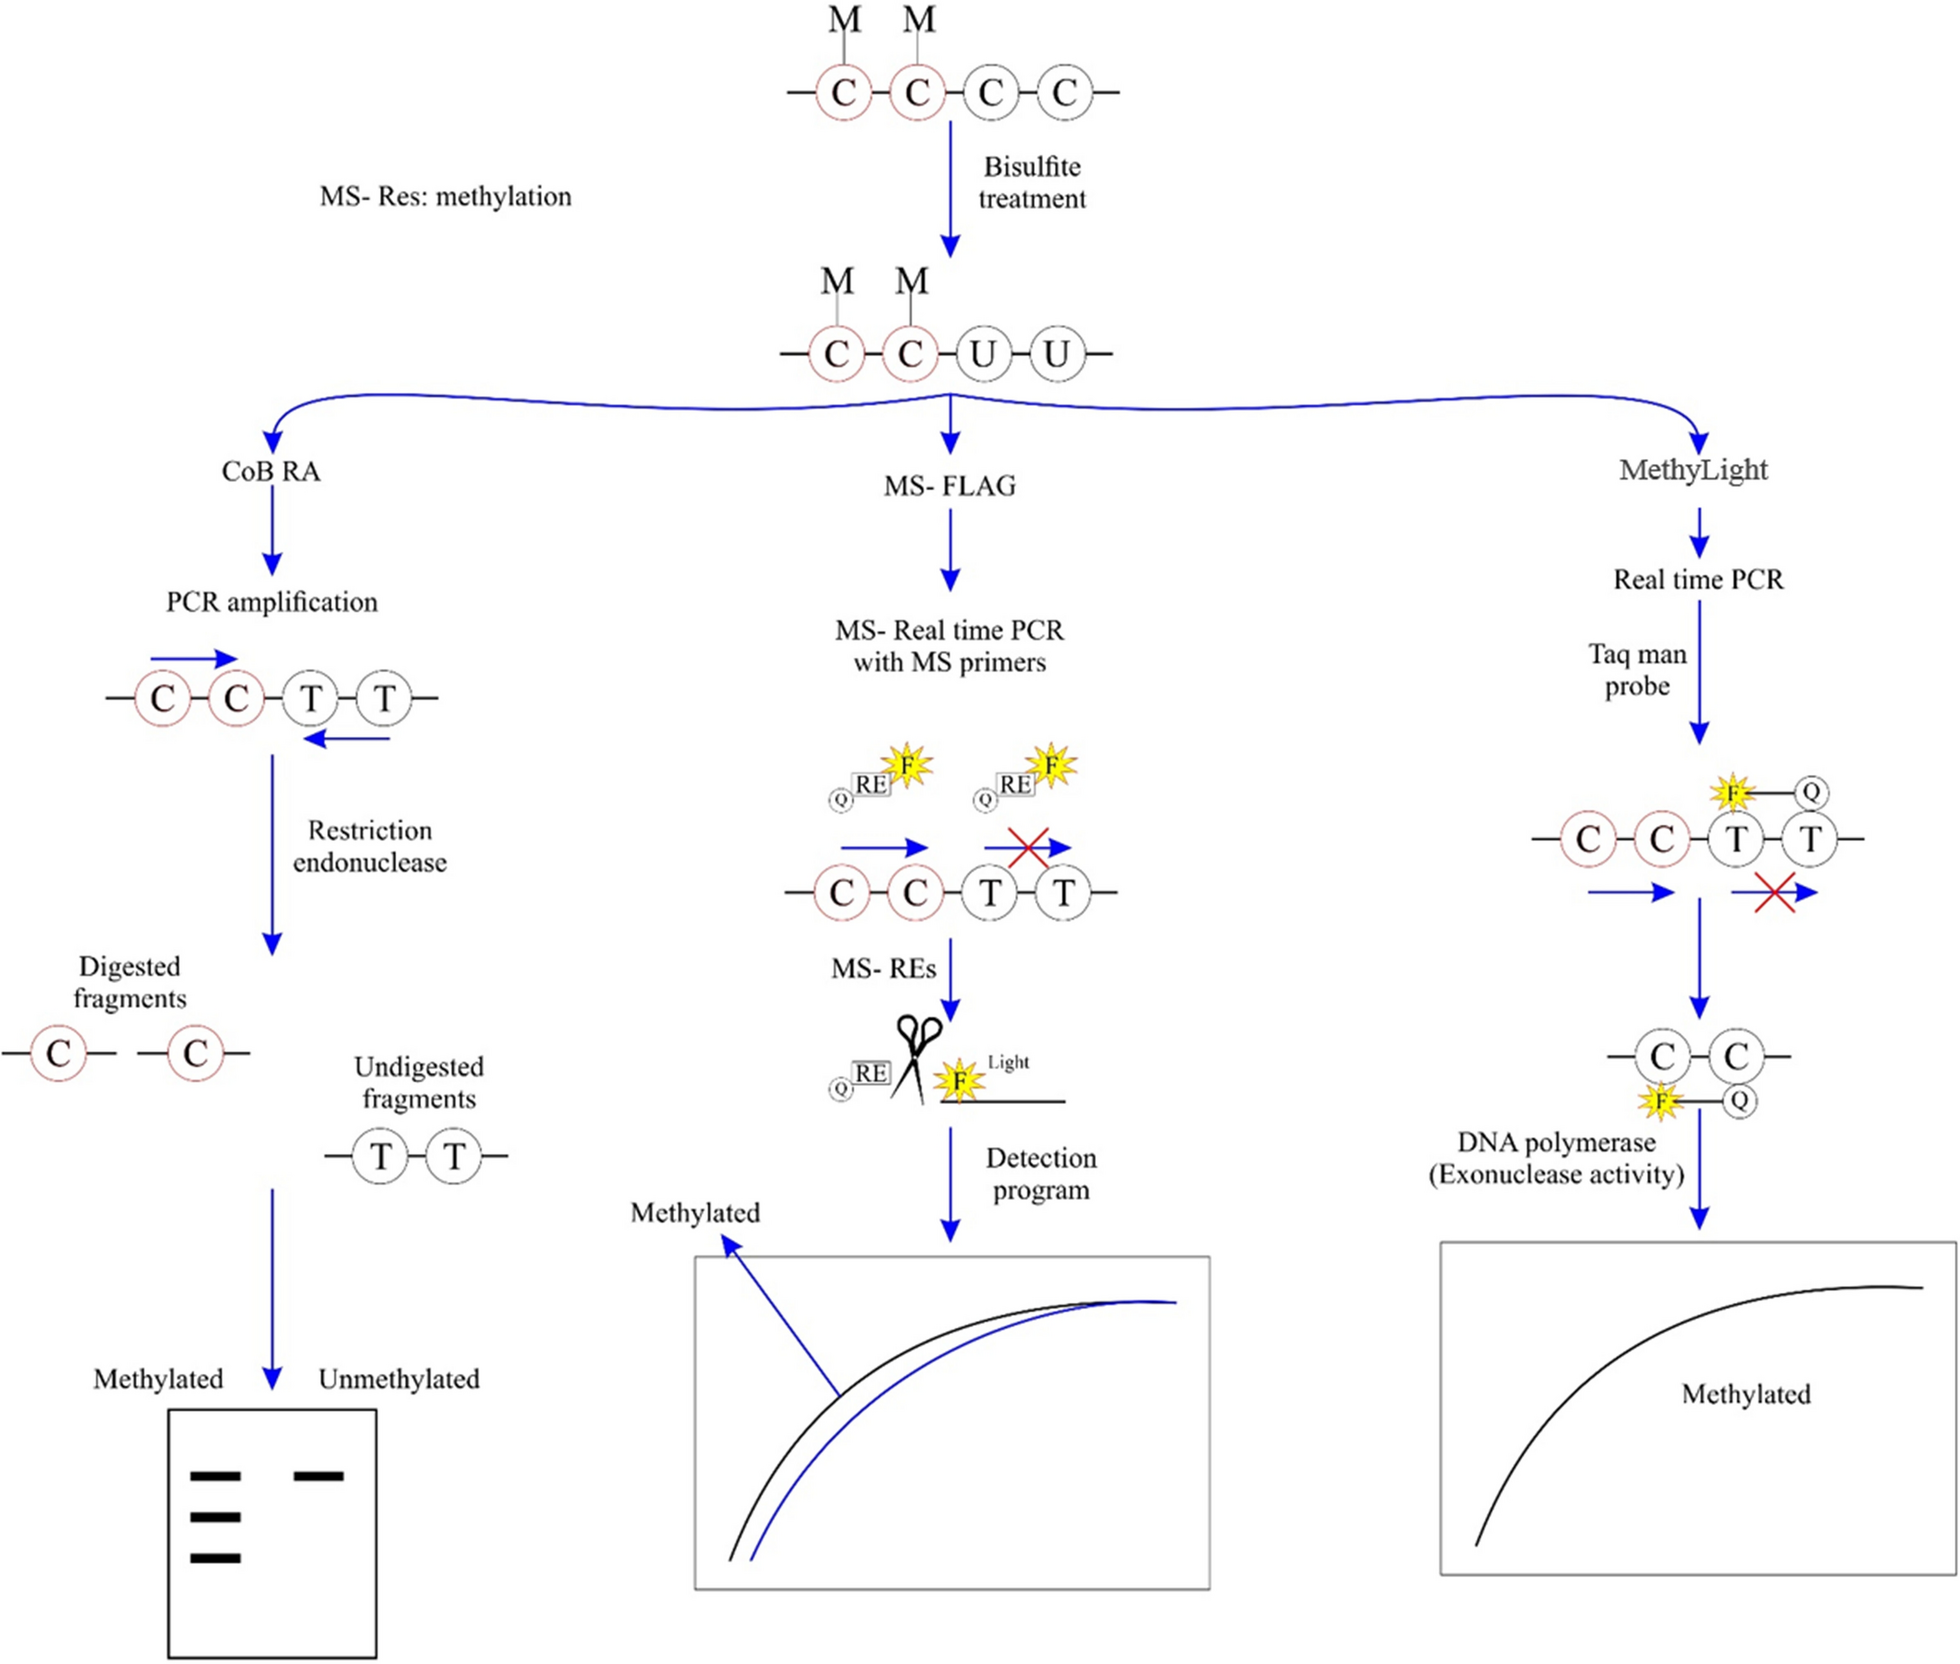
Konversi bisulfit (standar emas)
- Sitosin tidak termetilasi menjadi urasil, dibaca T setelah PCR
- 5mC tetap C
- Turunan: MSP, sekuensing bisulfit, pyrosequencing, MethyLight
Keterbatasan: DNA rusak akibat bisulfit, dan 5mC tidak dapat dibedakan dari 5hmC.
Metode tanpa bisulfit (lebih baru)
- EM-seq: konversi enzimatik (TET2 dan APOBEC3A), DNA lebih utuh
- Nanopore dan PacBio: membaca 5mC dan 5hmC langsung dari sinyal, tanpa konversi, pada fragmen panjang
Pilihan metode bergantung tujuan: klinis terarah (MSP, pyrosequencing) atau genom luas (sekuensing).
Figur: prinsip metode berbasis bisulfit
![Prinsip COBRA, MS-FLAG, dan MethyLight]()
Prinsip COBRA, MS-FLAG, dan MethyLight setelah konversi bisulfit. Jeddi F, et al. (2024) Cancer Cell Int 24:240, Fig. 1. CC BY 4.0.
Ringkasan mekanistik
- CpG dimetilasi pada C5 oleh DNMT memakai SAM, lewat base flipping dan ikatan kovalen sementara
- DNMT3A/3B menulis pola baru; DNMT1 dengan UHRF1 menyalinnya saat replikasi
- TET dan TDG menghapus metilasi secara aktif lewat jalur BER
- Metilasi membungkam dengan menghalangi faktor (CTCF) dan merekrut MBD serta HDAC
- Makna metilasi bergantung lokasi dan tipe sel
- Aplikasi nyata: imprinting, kanker (MLH1, MGMT), terapi hipometilasi, gizi, dan biopsi cair
Rujukan: review dan artikel terbaru
- Wei A, Wu H. (2022). Mammalian DNA methylome dynamics: mechanisms, functions and new frontiers. Development 149:dev182683.
- Petryk N, Bultmann S, Bartke T, Defossez PA. (2021). Staying true to yourself: mechanisms of DNA methylation maintenance in mammals. Nucleic Acids Res 49:3020-3032.
- Yang S, et al. (2025). Evolutionary and structural insights into DNMTs and TETs. BMC Mol Cell Biol 26:26.
- Heredia-Mendez AJ, Sanchez-Sanchez G, Lopez-Camarillo C. (2023). Reprogramming of the genome-wide DNA methylation landscape in three-dimensional cancer cell cultures. Cancers 15:1991.
- Vuu YM, Roberts CT, Rastegar M. (2023). MeCP2 is an epigenetic factor that links DNA methylation with brain metabolism. Int J Mol Sci 24:4218.
- Ortega B, et al. (2026). H19 and IGF2 imprinting from embryogenesis to oncogenesis. Front Cell Dev Biol 14:1698015.
- Loyfer N, et al. (2023). A DNA methylation atlas of normal human cell types. Nature 613:355-364.
- Rendek T, et al. (2024). Current challenges of methylation-based liquid biopsies in cancer diagnostics. Cancers 16:2001.
- Jeddi F, et al. (2024). The common bisulfite-conversion-based techniques to analyze DNA methylation in human cancers. Cancer Cell Int 24:240.
- Klein EA, et al. (2021). Clinical validation of a targeted methylation-based multi-cancer early detection test. Ann Oncol 32:1167-1177.
Rujukan: buku dan artikel klasik
- Alberts B, et al. (2022). Molecular Biology of the Cell, 7th ed. Garland Science. Bab 4 dan 7.
- Gardiner-Garden M, Frommer M. (1987). CpG islands in vertebrate genomes. J Mol Biol 196:261-282.
- Sharif J, et al. (2007). The SRA protein Np95 mediates epigenetic inheritance by recruiting Dnmt1 to methylated DNA. Nature 450:908-912.
- Tahiliani M, et al. (2009). Conversion of 5-methylcytosine to 5-hydroxymethylcytosine in mammalian DNA by MLL partner TET1. Science 324:930-935.
- Hegi ME, et al. (2005). MGMT gene silencing and benefit from temozolomide in glioblastoma. N Engl J Med 352:997-1003.
- Waterland RA, Jirtle RL. (2003). Transposable elements: targets for early nutritional effects on epigenetic gene regulation. Mol Cell Biol 23:5293-5300.
- Heijmans BT, et al. (2008). Persistent epigenetic differences associated with prenatal exposure to famine in humans. PNAS 105:17046-17049.
Gambar Wikimedia Commons: detail penulis dan lisensi tiap berkas tercatat di img/CREDITS.md (dibuat otomatis oleh get_images.py).